
BAS 放大系统|解锁 ELISA 更低检出限的秘密
发表时间:2026-11-10生物素‑亲和素系统(Biotin‑Avidin System,BAS)是 20 世纪 70 年代末建立起来的经典生物桥联与信号放大体系,凭借生物素与亲和素家族蛋白之间极强、极稳定的特异性相互作用,突破传统抗原‑抗体结合的信号上限,现已广泛融入免疫检测、原位标记、分子捕获、蛋白纯化等诸多实验平台。BAS 不改变抗原抗体识别的特异性,只作为独立的 “信号中继与放大模块”,是痕量生物标志物检测中非常成熟、可稳定复刻的技术方案。
生物素又称维生素 H、维生素 B7,是一种分子量仅 244 Da 的小分子环状羧酸,天然存在于动植物组织、血清、细胞裂解液中,在体内作为羧化酶的辅酶参与糖、脂、氨基酸代谢。
生物素分子结构中包含一个咪唑酮环与一个噻吩环,咪唑酮环是和亲和素蛋白结合的核心区域;侧链末端的羧基可以通过化学活化,转化为 NHS 酯、Sulfo‑NHS 酯等活性衍生物,在温和 pH 条件下与抗体、重组蛋白、多肽、核酸等大分子上的氨基发生共价偶联,完成生物素标记。
生物素标记有几个关键优势:分子极小,标记后一般不会显著破坏抗体的抗原结合活性;标记比例可控,可通过投料摩尔比调整每个抗体上连接的生物素数量;标记产物稳定,游离生物素可以通过透析、凝胶过滤、脱盐柱轻松去除,避免游离生物素竞争性干扰后续反应。
亲和素家族蛋白均为同源四聚体,每个亚基独立拥有一个生物素结合口袋,1 分子蛋白最多可以同时结合 4 分子生物素,这是 BAS 能够实现多价桥联、信号放大最根本的结构基础,但三种蛋白来源、修饰、理化性质差异很大,直接决定体系背景与适用场景。
提取自鸡卵清,分子量约 64 kDa,属于糖蛋白,带有约 10% 糖基修饰,等电点 pI≈10,碱性很强。糖链与正电荷容易和固相、组织、蛋白发生非特异性静电吸附,背景偏高,现在 ELISA 中已经较少直接使用。
来源于链霉菌,分子量约 55 kDa,无糖基化修饰,等电点接近中性(pI≈5~7),非特异吸附远低于卵亲和素,是当前免疫检测(ELISA、IHC、流式)的首选。它和生物素的解离常数 Kd≈ 10-14 M,亲和力远高于普通抗原抗体相互作用,结合速度快、复合物极稳定,耐受宽泛的 pH、温度、去污剂、反复洗涤,很难解离。
是去糖基化改造后的卵亲和素,消除了糖链带来的非特异结合,保留四聚体结合特性,背景同样很低,多用于对非特异信号控制极其严苛的体系。
生物素与链霉亲和素的结合属于非共价相互作用,但亲和力极高;一旦结合完成,常规洗板、孵育条件几乎无法将二者分开,这也是 BAS 放大体系重复性好、批间差可控的核心原因。
根据桥联顺序、标记物位置,BAS 衍生出四种主流方案,放大倍数、操作复杂度、背景风险各不相同,也是不同试剂盒选型的理论依据:
生物素化抗体 + 酶直接标记的链霉亲和素(SA‑HRP / SA‑AP)。流程短、步骤少,是目前 BAS‑ELISA 最常用的方案;放大效果适中,背景可控,适合常规夹心 ELISA。
生物素化抗体→游离亲和素→生物素化酶。亲和素作为游离桥梁,一边连接抗体上的生物素,一边连接酶上的生物素;优点是可以灵活更换酶标记物,缺点需要三步孵育,操作繁琐。
实验前预先按配比混合游离亲和素与生物素化酶,自发形成网状、多酶富集的 ABC 复合物。复合物内一个亲和素可以连接多个生物素化酶,单一位点富集的酶分子数量显著高于 BA 法,放大倍数更高,适合极低丰度靶标。缺点是复合物分子量大,容易在固相表面非特异吸附,背景更容易抬升,需要严格优化封闭、稀释浓度、孵育时长,在 IHC 中使用更广,ELISA 中会谨慎选用。
本质是改良版 BA,以无糖基链霉亲和素替代卵亲和素,也就是我们现在常说的 SA‑HRP 体系,是商业化免疫试剂盒的主流选择,兼顾灵敏度与低背景。
- 放大潜力强:依托四价结合特性,在单个抗原结合位点富集大量酶分子,把单一结合事件转化成大量酶促催化信号;
- 通用性极强:一套 SA‑HRP 试剂可以适配所有生物素化抗体,试剂盒开发时不需要为每一个靶标单独制备酶标二抗,简化试剂备货、配对验证;
- 反应稳定性优异:生物素‑链霉亲和素复合物耐受洗涤、缓冲体系波动,检测 CV 更容易控制;
- 模块化设计:BAS 是独立放大单元,可以直接叠加到夹心、间接、竞争式免疫分析上,原有抗原抗体配对方案不需要重新开发,仅把检测抗体替换成生物素化版本即可升级灵敏度。
- 内源性生物素干扰:血清、血浆、肝肾组织裂解样本含有天然游离生物素,会竞争性抢占链霉亲和素的结合位点,造成信号压低(假阴性)或异常抬升(假阳性);
- 背景风险:ABC 复合物、高浓度 SA‑HRP、过度生物素标记的抗体,都会提升非特异吸附;
- 线性区间收窄:信号放大后更容易发生酶促信号饱和,标准曲线的高浓度端更容易进入平台;
- 游离生物素残留干扰:抗体生物素化之后如果脱盐纯化不充分,残留游离生物素会直接消耗 SA‑HRP,造成整体信号偏低。
常规 ELISA 依靠酶直接标记的检测抗体产生信号,一个抗体分子仅偶联有限数量的酶,当靶标蛋白丰度极低(pg/mL 级别细胞因子、趋化因子、微量循环标志物)时,信号和阴性本底区分不开,检出限无法满足实验需求。将 BAS 作为放大模块嵌入 ELISA,就是 BAS‑ELISA,实现高灵敏检测的目的。
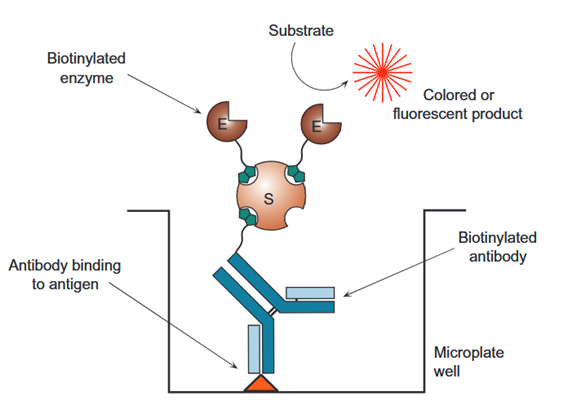
- 捕获抗体包被于酶标板固相,封闭非特异吸附位点;
- 加入待测样本,样本中的靶标抗原与固相捕获抗体特异性结合;
- 洗板后加入生物素化检测抗体,形成【固相捕获抗体‑抗原‑生物素化检测抗体】夹心免疫复合物;
- 再次洗板,加入 SA‑HRP(或 SA‑AP);链霉亲和素结合检测抗体上的生物素,把大量 HRP 富集到抗原结合位置;
- 洗去未结合的 SA‑HRP,加入底物(TMB、pNPP 等)进行酶促显色或发光,终止反应后,酶标仪读数。
对比普通直接酶标二抗的夹心 ELISA,同一个抗原位点上富集的酶数量显著提升,检出限通常可降低 5~10 倍,能够检出普通 ELISA 无法区分的弱阳性、低浓度样本。
除夹心法外,BAS 也可以改造间接 ELISA、竞争 ELISA:在间接法中,生物素化二抗识别样本结合在固相上的一抗,再用 SA‑HRP 放大;竞争 ELISA 中,生物素标记抗原与样本内抗原竞争固相抗体,再通过 SA‑HRP 示踪,多用于小分子毒素、激素检测。
低丰度细胞因子(TGF‑β、IL 系列、IFN、VEGF 等)、微量肿瘤标志物、神经损伤标志物、自身抗体、中和抗体滴度检测、药物残留、外泌体相关蛋白定量等科研与体外诊断场景。同时该体系可以适配比色法、化学发光板式 ELISA,也可以迁移至免疫印迹、多色免疫荧光、微球流式捕获等其他免疫平台。
- 优先选择链霉亲和素标记物而非卵亲和素,降低糖基带来的背景;
- 生物素化抗体标记完成后必须脱盐去除游离生物素;
- 针对内源生物素丰富的血清样本评估干扰,必要时增加封闭步骤;
- 梯度摸索 SA‑HRP 工作浓度与孵育时间,避免酶过量堆积抬升本底;
- 标准曲线设置更低浓度梯度,评估 LOD、LOQ,预判高浓度端信号饱和问题。